與那國島
2026年9月15日
趁著到與那國町議會選舉採訪出差的機會,順道去賞鳥了。^^
確認到多隻過境的赤腹鷹,普通隼也已飛來準備越冬。此外也記錄到過境中的三寶鳥與灰紋鶲,越冬的棕背伯勞、極北柳鶯與東方黃鶺鴒也大批到來。
與那國島近年稻田減少,鷸鴴類數量偏少,只見到少數的黑翅長腳鷸、尖尾濱鷸、普通沙錐、林鷸、長趾濱鷸、磯鷸與紅頸濱鷸。
繁殖結束後的翠翼鳩已結成小群,多次見到牠們覓食的身影。
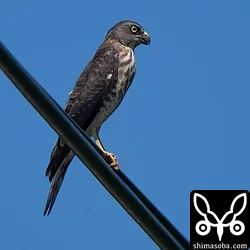
赤腹鷹幼鳥。也觀察到數隻在空中翱翔的成鳥。
趁著到與那國町議會選舉採訪出差的機會,順道去賞鳥了。^^
確認到多隻過境的赤腹鷹,普通隼也已飛來準備越冬。此外也記錄到過境中的三寶鳥與灰紋鶲,越冬的棕背伯勞、極北柳鶯與東方黃鶺鴒也大批到來。
與那國島近年稻田減少,鷸鴴類數量偏少,只見到少數的黑翅長腳鷸、尖尾濱鷸、普通沙錐、林鷸、長趾濱鷸、磯鷸與紅頸濱鷸。
繁殖結束後的翠翼鳩已結成小群,多次見到牠們覓食的身影。
赤腹鷹幼鳥。也觀察到數隻在空中翱翔的成鳥。
來到本月第三次造訪的與那國島。白鶺鴒、東方黃鶺鴒、小鵐、白頂溪鴝以及紅背伯勞等小型鳥類相當引人注目。
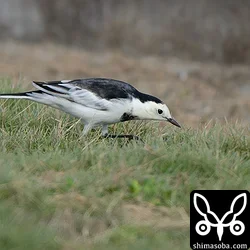
白鶺鴒出現了3個亞種混合的群體。這隻是白臉鶺鴒的雄鳥。
石垣島的春季過境自2月便逐漸展開,進入3月後愈發活絡。首先是鷸、鴴的種類持續增加。在島上越冬的紅背伯勞與椋鳥類也開始北返。
部分蛇鵰幼鳥已陸續換羽。
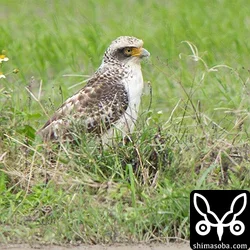
冠鷹雕幼鳥。由於這裡是成鳥配對的領域,牠每次被發現都會遭到追趕,但仍執拗地賴著不走。
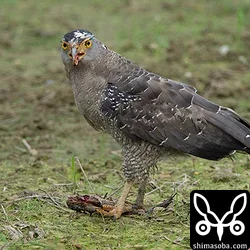
冠蛇鵰正在捕食有毒的海蟾蜍。以下轉載我於7月19日在報紙上所撰寫的關於冠蛇鵰毒素耐性的報導。
國內僅棲息於石垣島與西表島的冠蛇鵰,已知會捕食具有毒性的海蟾蜍。京都大學戶部有紗氏等研究團隊透過基因分析,揭示冠蛇鵰可能具備抵抗毒素的能力。研究發現,冠蛇鵰在數萬年乃至數十萬年前便已持有抗毒耐性基因突變,早在海蟾蜍被引入石垣島之前,這一「隱藏能力」便已存在。研究成果於7月14日發表於科學期刊「 BMCエコロジー・アンド・エボリューション 」。
海蟾蜍約於1978年前後,以防治甘蔗害蟲為目的被引入石垣島。其皮膚會分泌強效的心臟毒性類固醇「蟾毒二烯醇化物」,此毒素具有使心臟停止運作的作用。原生蛇類八重山赤腹遊蛇捕食後死亡的案例亦已獲得確認。另一方面,冠蛇鵰即便攝食毒性強烈的海蟾蜍皮膚,也未出現任何症狀,當地野鳥觀察者早已注意到這一現象,但科學上的解明此前尚未完成。
研究團隊分析了2020年至23年間因事故或疾病死亡的共24隻冠蛇鵰的組織樣本。研究聚焦於細胞膜上負責離子運輸、作為毒素作用靶點的酶,並在與毒素耐性相關的關鍵位點發現了名為「Q111E突變」的胺基酸置換。此突變可能使海蟾蜍毒素無法與酶結合,從而使毒性失效。類似的突變在捕食蟾蜍的蛇類,以及捕食有毒蝴蝶的鳥類中也有發現,被認為是「趨同演化」的案例——即系統親緣關係不同的生物,在不同地點的演化過程中,最終形成相似的形態或特徵。
令人驚訝的是,海蟾蜍尚未定居的西表島冠蛇鵰,以及遠在印尼錫默盧島的冠蛇鵰亞種,也同樣攜帶相同的耐性基因。基因分析結果推測,這一性狀早在外來種被引入之前許久,從冠蛇鵰作為物種分化之時便已保存至今。京都大學野生動物研究中心的戶部氏表示:「冠蛇鵰的毒素耐性並非對近期環境變化的適應,而是從祖先繼承下來的古老性狀。這是一個難得的案例,恰巧減輕了外來種帶來的生理影響。」
研究中亦確認,與冠蛇鵰親緣關係相近的短趾雕屬鳥類也具有類似的耐性基因突變。南非的黑胸短趾雕在圈養條件下持續餵食有毒蟾蜍長達12個月,仍未出現健康異常的報告,顯示這可能是該類群特有的能力。另一方面,在日本小笠原諸島也有東方鵟捕食同種海蟾蜍的記錄,但東方鵟的基因中並未發現明確的毒素耐性突變,可能是透過不同機制加以應對。
本次研究也發現,石垣島與西表島的冠蛇鵰族群在遺傳上已明顯分化。儘管兩島相距僅20公里,卻證實了個體之間幾乎沒有往來,研究團隊說明:「這顯示西表島與石垣島的族群應被視為獨立的保育單元。」研究揭示了生物所具備的「隱藏能力」在應對環境變化中可能扮演重要角色。這是一項為生物多樣性保育提供全新視角的重要成果,但戶部氏也提出警示:「不能因為冠蛇鵰會利用外來種,就對外來種問題坐視不管。一旦冠蛇鵰將其納入食物來源,外來種便已逐漸融入生態系統,甚至可能進一步破壞整體平衡。」近年來,外來種對生態系統的影響已成為全球性問題,此次發現將目光投向原生物種意想不到的適應能力,再次凸顯了生物演化的深邃奧妙與保育策略的複雜性。
冠鷹雕正在吃海蟾蜍。如論文所述,牠似乎對毒素毫無影響。
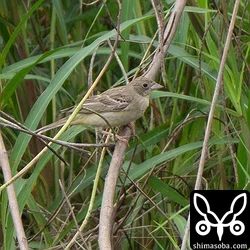
久違地出現了黑頭鵐。很可能與約一週前在同一片稻田中短暫確認到的個體是同一隻。牠混入了數百隻麻雀的群體中。
山鶺鴒出現在一如往常的林道上。這是本季第6隻。這個時期飛來的話,越冬的可能性相當高。去年也有山鶺鴒在同處越冬。不過,一旦進入越冬模式,就常待在林內,觀察起來會比較困難。
極北柳鶯從10月上旬開始陸續現身。剛遷來時常以數隻一群的方式活動,但目前已分散於島內各處,各自占據小型領域。許多個體將這樣一直停留到春天。進入4月後,牠們會再次集結成群,準備北上,也會有個體開始鳴唱。
燕雀也現身了。牠們加入麻雀群,在稻田裡啄食二期米的稻穀。
白肩椋鳥混在以白頰椋鳥為主、數十隻的群體中,同時還有約20隻紫翅椋鳥相伴,其中有數隻白肩椋鳥。島內越冬的白肩椋鳥本身數量不少,在公園等地也常可見到數十隻的群體。
這個時期的田鷸幾乎都是普通田鷸,但在十幾隻的群體中,只有2隻是中地鷸。等二期米開始收割後,牠們應該就會消失。其他鷸鳥方面,赤足鷸、青腳鷸、澤鷸、高蹺鴴、林鷸、磯鷸、磯鷸、長趾濱鷸等也在稻田中停留中。
雁鴨也越來越多,觀察到了本季首隻綠頭鴨。石垣島和沖繩的綠頭鴨以前相當少見,但感覺近年來觀察到的數量逐年增加。
在麻雀群中顯得格外醒目的黑頭鵐,三不五時就欺負麻雀……。
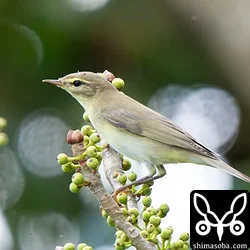
趁著前往與那國島出差的空檔賞鳥。感受到秋季過境逐漸熱絡的氣氛,沿著林道慢慢走,發現了鳥兒聚集的稜果榕。正在觀察繡眼畫眉的群隊時,一隻黃色的柳鶯突然闖入視野。舉起雙筒望遠鏡一看,是北柳鶯!!牠在枝條間不停移動,似乎在捕食小昆虫。
此外,還初次記錄到赤腹鷹、三寶鳥、烏灰鶲、亞洲褐鶲、鷸、花鳧、田鷸、灰背椋鳥等。不愧是與那國島。^^
北柳鶯登場。與其他日本產的柳鶯明顯不同,相當顯眼。
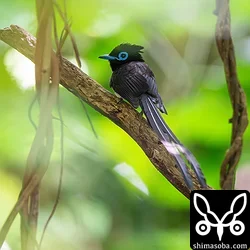
黑枕王鶲的數量增多了。常能遇到正在努力築巢的赤翡翠配對。褐鷹鴞也在繁殖初期,可見到已完成配對的個體。另發現一隻疑似草原鵟的個體。
一對壽帶鳥形影不離,應該會在附近築巢吧。
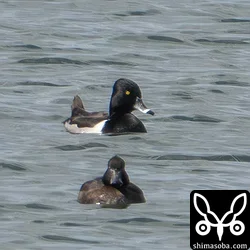
從600隻鳳頭潛鴨中找出了沖繩縣第2例紀錄的環頸潛鴨。距離超過200公尺,視野又被枝葉遮擋,條件相當不利,但花了約1小時終於找到。一旦確認了牠所在的區域,之後就沒有再失去蹤影,得以持續觀察超過1小時。
環頸潛鴨雄鳥繁殖羽。繼2023年的宮古島之後,成為縣內第2例珍貴紀錄。
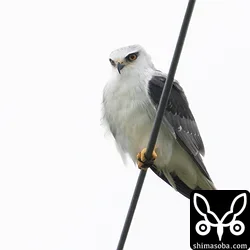
黑翅鳶幼鳥最近似乎終於開始獨立生活了。石垣島的黑翅鳶一年繁殖多次,族群數量持續增加。去年越冬的遊隼一對,今年也回到了同一地點。同一區域還有高山鵟出沒,白骨頂和鷺鳥們看來都人心惶惶。附近的蛇鵰幼鳥被2隻遊隼追趕,似乎嚇了一大跳。
2隻凍原天鵝持續留鳥中。北田鷸幾乎都是幼鳥,約10隻飛來。水田裡,澤鷸、青腳鷸、紅腳鷸、林鷸、琵嘴鴨、綠翅鴨等熱鬧非凡。也確認了本季首見的鳳頭潛鴨。
毫無警戒心的黑翅鳶幼鳥。從地點和時節來看,或許就是之前那隻 在空中接受親鳥餵食的個體。
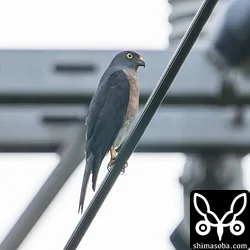
赤腹鷹的遷徙已經開始。天氣雖然不穩定,但預計接下來將進入高峰期。今季首次記錄的小水鴨飛來2隻。
赤腹鷹雌成鳥。
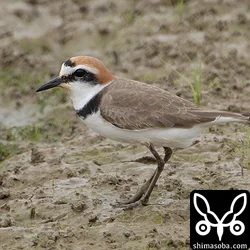
來了一隻看起來與石垣島繁殖個體略有不同的環頸鴴。平時不太認真觀察環頸鴴,但這隻個體十分顯眼。
本季首見的白翅黑燕鷗也確認到了,兩隻在稻田上空飛翔。白琵鷺幼鳥仍在滯留中,是一隻嘴喙顯得異常白的個體。木鷸和黑翅長腳鷸也逐漸增加,不過今季稻田鷸鳥的高峰始終遲遲未到。小環頸鴴和長趾濱鷸也在慢慢增加。
棕背伯勞正移往繁殖地,數量減少中。越冬的遊隼夫婦仍在滯留。家附近那隻獨眼蛇鵰還勉強活著。石垣山雀看起來忙於育雛。
環頸鴴雄鳥夏羽。真美。在沖繩繁殖的族群顏色要淡得多。
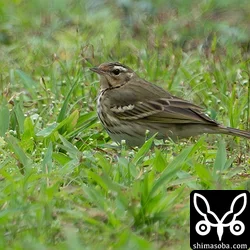
去年起就在數個地點越冬,卻一直難以拍到的樹鷚。這天循鳴聲找到了牠們,六隻停在草地上。在許多小鳥東奔西跑之中,樹鷚從容不迫的動作讓人心情舒緩。
樹鷚附近也有斑點鶇。今冬斑點鶇、白腹鶇和褐頭鶇都非常少。行經林道時偶爾能從灌叢中聽到叫聲,但幾乎沒有個體走到農耕地上來。有些年份冬天到處都是赤腹鶇,看來個體數量因年份不同而有所起伏。
水田裡有東方黃鶺鴒和紅喉鷚數十隻的群體,十幾隻白鶺鴒之中也混有白面白鶺鴒。本季白面白鶺鴒少、白頭白鶺鴒多。
白腰濱鷸、青腳鷸、林鷸、金眶鴴等也零星滯留中。
終於拍到了樹鷚。住家附近也有幾隻,但警戒心很強,一直拍不到照片。
東方黃鶺鴒和紅喉鷚一度短暫增加,現在數量又減少了。比往年少了許多。
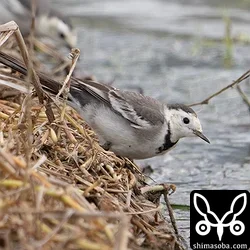
白臉鶺鴒雌鳥第一回冬羽。
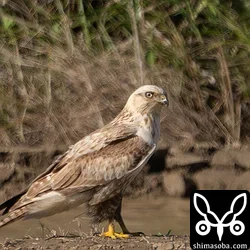
大鵟、西伯利亞隼、東方澤鵟、灰臉鵟鷹、紅隼、短耳鴞等在石垣島越冬的猛禽已陸續到齊。
成為獵物的鴨類、骨頂雞和小型鳥類,每當猛禽出現時便如臨大敵,緊張不已。
大鵟幼鳥。雖然每年都會出現,但這隻個體警戒心弱,容易觀察和拍攝。
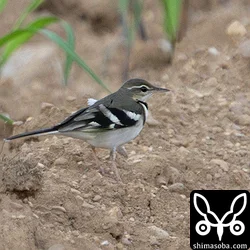
下班途中,看到約50隻灰鶺鴒和20隻東方黃鶺鴒的群體正在準備入夜棲前的大集合,我便開始尋找混入其中的特殊個體,發現了1隻森林鶺鴒。一般來說,森林鶺鴒棲息於林道,沒想到竟在甘蔗田裡與之相遇,實在令人驚訝。
隔天在同一地點,牠又混在灰鶺鴒群裡,研判白天應在某處林道活動。同一群中也有1隻白鶺鴒。若能就這樣跟著灰鶺鴒們一起越冬就太好了。
紅鳩有2隻持續留棲,但黑翅鳶、白腹鷂、雀鷹等每天都來,顯得坐立難安。不知為何,紅尾伯勞也與紅鳩和山斑鳩一同行動,或許是因為猛禽令牠們感到恐懼吧。
在甘蔗田裡巧遇白眉鶺鴒,是難得的體驗。看來牠與其他鶺鴒共同夜棲。
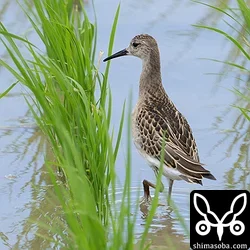
流蘇鷸飛抵多處,幾乎都是幼鳥。紅頸濱鷸、青腳鷸、澤鷸、赤足鷸、長趾濱鷸等常見種在各處田裡持續滯留。黑腹濱鷸也開始出現。
本季初見的太平洋金斑鴴幼鳥以數隻小群飛來。公園及牛棚周邊,栗頰椋鳥、絲光椋鳥、白肩椋鳥也明顯增多。
流蘇鷸幼鳥。
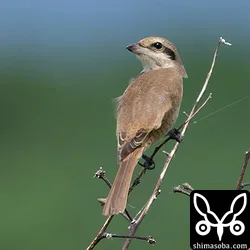
因公事前往北部,發現棕背伯勞增多了。南部的個體應該也會陸續增加。黃鶺鴒清一色都是白眉黃鶺鴒,照理說(黃眉)黃鶺鴒等也該到了……。
棕背伯勞第一回冬羽。
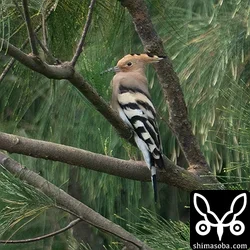
島內各處陸續記錄到戴勝,本季開局看來還不錯。
從去年起越冬的粉紅椋鳥換羽正在緩緩推進。很希望牠能盡量久留,但總感覺牠快要遷走了……
最近,相當大的一群絲光椋鳥頻繁造訪上班地點的停車場,似乎在啄食種植的木麻黃果實。
一隻毫無警戒心的虎斑地鶇現身了,是來訪的秋田縣友人發現後告知我的。去年底到元旦前後有不少機會遇見虎斑地鶇,之後便銷聲匿跡。這隻應是春季遷徙途中停下來歇腳的。
日本樹鶯在滿洲樹鶯完全消失後,數量一口氣大增,常有機會聽到練習鳴唱的聲音。小鵐和赤喉鷚不知是過境鳥還是島內移動個體,動向頻繁,時增時減。
必出點的戴勝。看來大約有4隻。
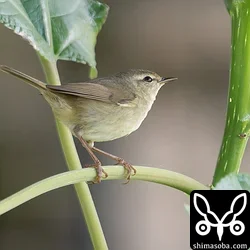
日本樹鶯的活動愈來愈明顯,在海岸林等地,數隻聚集在一起,彷彿正在準備遷徙。也常聽到生澀的練習鳴唱。
在海岸林與農地交界處移動的日本樹鶯。感覺有好幾隻一起在活動。
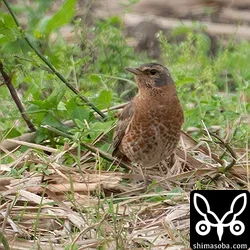
開車行經農耕地時,發現一隻橙色的鳥。用雙筒望遠鏡一看,是一隻色彩鮮豔的紅尾鶇。庭院裡飛來8隻樹鷚,是在聚落越冬的族群。整個冬天下來,已經相當習慣人的存在了。
看似正在遷移途中的白鶺鴒和東方黃鶺鴒,每天輪番出現可供觀察。
在石垣島較為罕見的金翅雀,目前停留在收割後殘留的水稻上。
色彩鮮豔的八丈島鶇。即使距離較遠,用肉眼也能察覺,十分顯眼。